Dormancija pupova i prekid mirovanja
Sadržaj generiran umjetnom inteligencijom — provjerite prije primjene
Ovaj je članak automatski sastavljen iz zbirke literature o lješnjaku uz pomoć umjetne inteligencije i može sadržavati pogreške ili zastarjele podatke. Služi kao polazište za daljnje istraživanje, a ne kao stručni savjet. Doze, sredstva i rokovi su informativni te ovise o sorti, lokaciji i važećim propisima — obavezno provjerite kod savjetodavne službe i na službenim izvorima prije primjene.
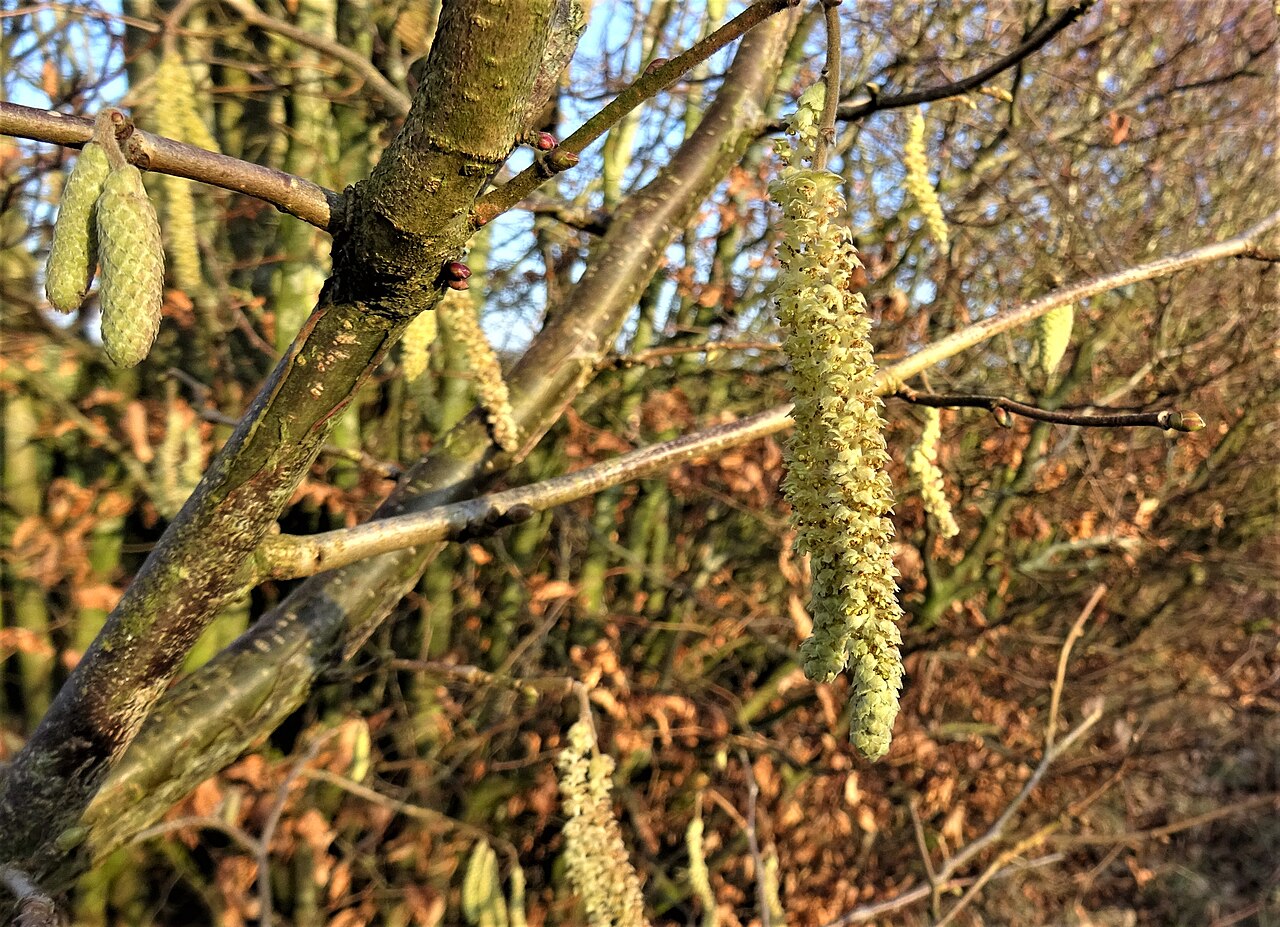
Dormancija (mirovanje) je razdoblje u kojem lijeska (Corylus avellana) privremeno zaustavlja vidljivi rast kako bi preživjela nepovoljno zimsko razdoblje hladnoće i ograničene dostupnosti vode. Mirovanje nije pasivno "spavanje" nego aktivno, fiziološki regulirano stanje koje biljku štiti od preuranjenog kretanja vegetacije prije nego što vanjski uvjeti postanu povoljni za razvoj. Za proizvođača lijeske razumijevanje dormancije nije akademska tema: upravo dinamika mirovanja i njegova prekida određuje kada će procvjetati rese i ženski cvjetovi, koliko je nasad izložen riziku od kasnih mrazeva te kako pojedina sorta reagira na sve toplije i nepredvidljivije zime. U ovom članku objašnjavamo tri faze mirovanja (para-, endo- i ektodormancija), hormonalnu pozadinu koja njima upravlja, ulogu hladnoće i topline u prekidu mirovanja te praktične posljedice za ranu cvatnju i upravljanje nasadom.
Što je dormancija i zašto postoji
Biljke umjerenog klimatskog pojasa moraju preživjeti razdoblje hladnoće i ograničene vode kroz dormanciju. Dormancija je definirana kao privremeni, endogeno (iznutra) reguliran i okolišem moduliran prekid rasta. U mirujućim stanicama on je autonomno "upisan" i očituje se kao karakteristično blokiranje genske aktivnosti, tako da rast ne kreće čak ni kad su vanjski uvjeti naizgled povoljni.
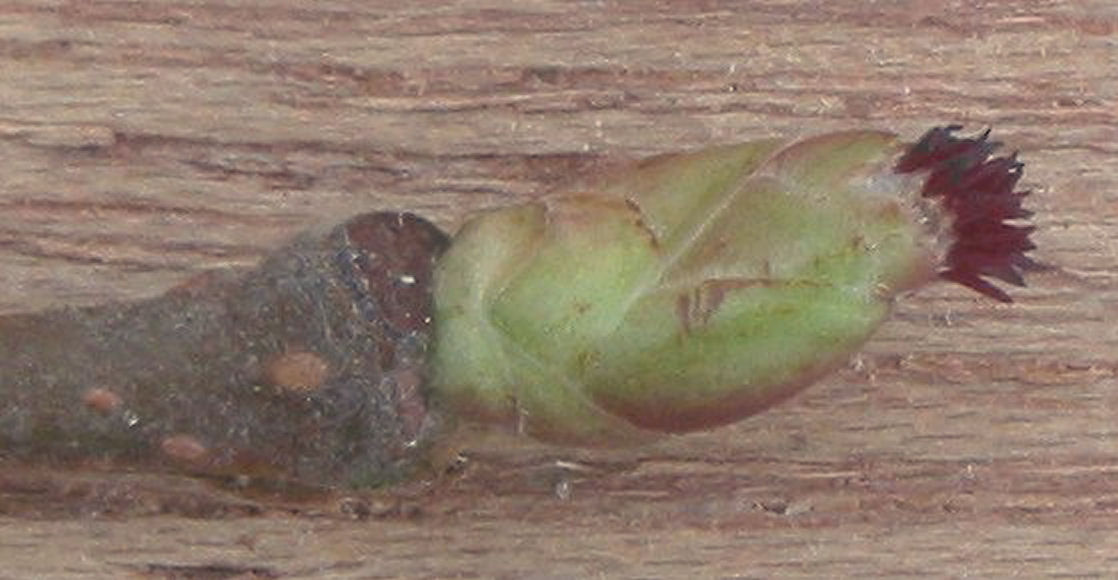
Smisao tog mehanizma je zaštitni. Lijeska je vrsta s iznimno ranom cvatnjom — rese (muški cvatovi) često se pojavljuju već u jesen, a ženski cvjetovi cvjetaju u prosincu, siječnju, veljači ili ožujku, ovisno o sorti i lokaciji. Da nema unutarnje "brave" koja drži pupove zatvorenima dok se ne ispuni potrebna količina hladnoće, topli dani usred zime potaknuli bi kretanje vegetacije, a sljedeći bi val mraza uništio osjetljive otvorene cvjetove ili tek potjerale pupove. Dormancija je, dakle, evolucijski osigurač protiv "lažnog proljeća".
Tri faze mirovanja: paradormancija, endodormancija i ektodormancija
Suvremena literatura (prema klasičnoj podjeli Lang i sur., 1987.) razlikuje tri faze mirovanja cvjetova i pupova lijeske. Razlika među njima je u tome odakle dolazi signal koji koči rast.
| Faza | Izvor kontrole rasta | Hoće li pup potjerati ako ga premjestimo na toplo? | Kako se prekida |
|---|---|---|---|
| Paradormancija | Drugi organi biljke (npr. listovi, vršni pupovi) putem hormona | Da — cvijet/pup još može potjerati u "forsiranim" uvjetima | Uklanjanjem inhibitornog signala iz susjednih organa |
| Endodormancija | Unutar samog pupa (endogena, samoregulirana kontrola) | Ne — pup ne kreće ni u idealnim uvjetima | Akumulacijom dovoljne količine hladnoće |
| Ektodormancija (ekodormancija) | Vanjski (okolišni) čimbenici: niske temperature, manjak vode/hraniva | Da — kreće čim uvjeti postanu povoljni | Akumulacijom topline (toplijim danima) |
Paradormancija
Paradormancija je početni prestanak rasta kao odgovor na skraćivanje dana i pad temperatura u jesen. U toj fazi cvijet ili pup još uvijek može procvjetati ako ga se stavi u tople, "forsirane" uvjete. Ključno je da to mirovanje nije samoregulirano: pup ne koči sam sebe, nego ga reguliraju hormoni koje proizvode drugi organi, primjerice listovi. Riječ je o vrsti korelativne inhibicije (organ A koči organ B).
Endodormancija ("pravo" mirovanje)
Endodormancija se smatra "pravim" stanjem mirovanja: ono je samoregulirano i obilježeno nemogućnošću nastavka rasta čak i u povoljnim uvjetima. Endodormanciju izazivaju signali poput hladnoće, fotoperioda ili svjetlosnog spektra, koji u pupu pokreću endogenu kontrolu rasta. Sve dok endodormancija traje, čak i dulje toplo razdoblje neće "probuditi" pup. Za izlazak iz endodormancije nužna je akumulacija dovoljne količine hladnoće — tzv. potreba za hlađenjem (engl. chilling requirement).
U modelima fenologije lijeske endodormancija rese počinje otprilike kad duljina rese dosegne plato (oko faze 5) i traje dok peludna zrnca ne sazriju (faza 7). Tijekom tog razdoblja svaka sorta treba određeni minimum hladnoće.
Ektodormancija (ekodormancija)
Nakon što je potreba za hlađenjem ispunjena, pup prelazi u ektodormanciju. Tada rast više nije kočen iznutra, nego ga zadržavaju samo nepovoljni vanjski uvjeti (prije svega niska temperatura). Čim nastupe topliji dani i akumulira se dovoljno topline, rast se nastavlja i pup kreće u cvatnju ili listanje. Prijelaz iz endo- u ektodormanciju događa se onog trenutka kad je dosegnut prag vremena provedenog na niskim temperaturama (Mehlenbacher, 1991.).
Praktična pouka: dva nasada na susjednim parcelama mogu izgledati jednako "mirno" usred zime, ali jedan može biti u endodormanciji (siguran od toplog vala), a drugi već u ektodormanciji (spreman potjerati pri prvom toplijem tjednu i izložen riziku od mraza).
Hormonalna regulacija mirovanja pupova
Mirovanje pupova reguliraju biljni hormoni, a to vrijedi za sve tipove mirovanja: mirovanje cvjetova, vegetativnih pupova, pazušnih pupova i sjemena. Novije istraživanje hormonoma resa lijeske tijekom zimskog mirovanja (2025.) ispitalo je ulogu pet ključnih ("kanonskih") biljnih hormona u regulaciji mirovanja resa:
- Apscizinska kiselina (ABA) — klasično se povezuje s uspostavom i održavanjem mirovanja te s odgovorom na stres. Povišena razina ABA-e i pripadnih signalnih komponenti (PYL receptori, PP2C, ABF transkripcijski faktori) povezuje se s ulaskom u mirovanje.
- Giberelini (GA) — općenito promiču rast i kretanje pupova; smanjenje inhibicije i porast GA-aktivnosti povezuju se s prekidom mirovanja i nastavkom rasta.
- Auksin — sudjeluje u korelativnim odnosima među organima (relevantno za paradormanciju).
- Citokinini (CTK) — povezani s aktivacijom staničnih dioba i pokretanjem rasta.
- Etilen — sudjeluje u signalizaciji vezanoj uz mirovanje i senescenciju (preko EIN3, ERF1/ERF2 i sličnih komponenti).
Pojednostavljeno, ravnoteža između hormona koji koče (osobito ABA) i onih koji potiču rast (osobito GA i citokinini) određuje hoće li pup ostati u mirovanju ili krenuti. Akumulacija hladnoće tijekom zime postupno mijenja tu ravnotežu — opada inhibicijski pritisak, a raste sklonost rastu. Promjene tijekom mirovanja vidljive su i u koncentracijama hormona i šećera, sadržaju vode u pupovima te u metabolizmu nukleinskih kiselina i bjelančevina. Klasični radovi (npr. Rodriguez i Sanchez-Tames, 1986., o sezonskim promjenama regulatora rasta u pupovima lijeske) već su davno opisali da se hormonska slika pupa mijenja kroz sezonu mirovanja.
Zašto je to važno za praksu: budući da se mirovanjem upravlja hormonski, ono se načelno može i modulirati (npr. tretmanima koji utječu na ravnotežu hormona ili na akumulaciju topline). U intenzivnom voćarstvu drugih vrsta koriste se sredstva za prekid mirovanja, no za lijesku takve primjene treba smatrati eksperimentalnima i obavezno provjeriti dopuštenost i registraciju kod nadležne službe prije bilo kakve primjene.
Prekid mirovanja: hladnoća pa toplina
Prekid mirovanja lijeske odvija se u dva koraka koji se zbrajaju kroz zimu i rano proljeće:
- Akumulacija hladnoće (prekida endodormanciju) — pup mora "skupiti" određeni broj sati na niskim temperaturama.
- Akumulacija topline (prekida ektodormanciju) — nakon ispunjene potrebe za hladnoćom, za kretanje rasta potreban je određeni zbroj toplinskih jedinica (stupanj-sati ili stupanj-dani rasta).
Temperaturni rasponi
Za ispunjavanje potrebe za hladnoćom i prekid pravog mirovanja pupova lijeske potrebne su temperature između 0 i 7 °C (u nekim izvorima navodi se i širi raspon, npr. 5–15 °C, kao učinkovit). Za toplinske potrebe računaju se sati pri temperaturama iznad približno 4 °C. Drugim riječima, hladnoća "otključava" pup, a naknadna toplina ga "pokreće".
Koliko hladnoće treba? Razlike među organima i sortama
Potreba za hladnoćom nije jednaka za sve organe iste biljke, a uvelike ovisi i o sorti (genotipu). Rese (muški cvatovi) imaju nisku potrebu za hladnoćom i visoku potrebu za toplinom, dok ženski cvjetovi imaju visoku potrebu za hladnoćom i nisku potrebu za toplinom. Upravo te razlike u zahtjevima objašnjavaju dihogamiju — vremenski razmak između cvatnje muških i ženskih cvjetova kod iste biljke.
Sljedeća tablica prikazuje okvirne raspone potrebe za hladnoćom prema literaturi (vrijednosti su informativne i variraju s metodom mjerenja i sortom):
| Organ | Okvirna potreba za hladnoćom (sati) | Napomena |
|---|---|---|
| Rese (muški cvatovi) | < 100 do ~860 h | Najniža potreba — najranije kreću |
| Ženski cvjetovi | ~290 do ~1550 h | Viša potreba za hladnoćom |
| Lisni / vegetativni pupovi | ~365 do ~1690 h | Najviša potreba — najkasnije kreću |
Izvor okvirnih vrijednosti: Mehlenbacher (1991.), Chilling requirements of hazelnut cultivars. Vrijednosti se razlikuju među sortama i s metodom procjene.
Najniže potrebe za hladnoćom zabilježene su kod vodećih sorti C. avellana iz Turske i južne Italije, što ih čini prilagođenima toplijim klimama, ali i sklonijima preranom kretanju u blagim zimama. Potreba za hladnoćom kod vegetativnih pupova klonova heterozigotnih za "ne-dormantno" svojstvo manja je nego kod klonova homozigotnih za dormantni alel — dakle, mirovanje je i nasljedno svojstvo koje se može selektirati u oplemenjivanju.
Kako se eksperimentalno utvrđuje kraj mirovanja
Kraj pravog mirovanja najčešće se određuje pokusom: u različitim trenucima tijekom zime režu se izboji i stavljaju u toplo okruženje, pa se promatra vrijeme potrebno do kretanja pupova ili opseg rasta nakon tri tjedna. Ako pupovi brzo kreću, endodormancija je prekinuta; ako ne kreću, potreba za hladnoćom još nije ispunjena. Bez ovakvih fizioloških mjera teško je, čak i nemoguće, pouzdano procijeniti prekid endodormancije samo iz dugogodišnjih opažanja u polju.
Posljedice za ranu cvatnju i osjetljivost na mraz
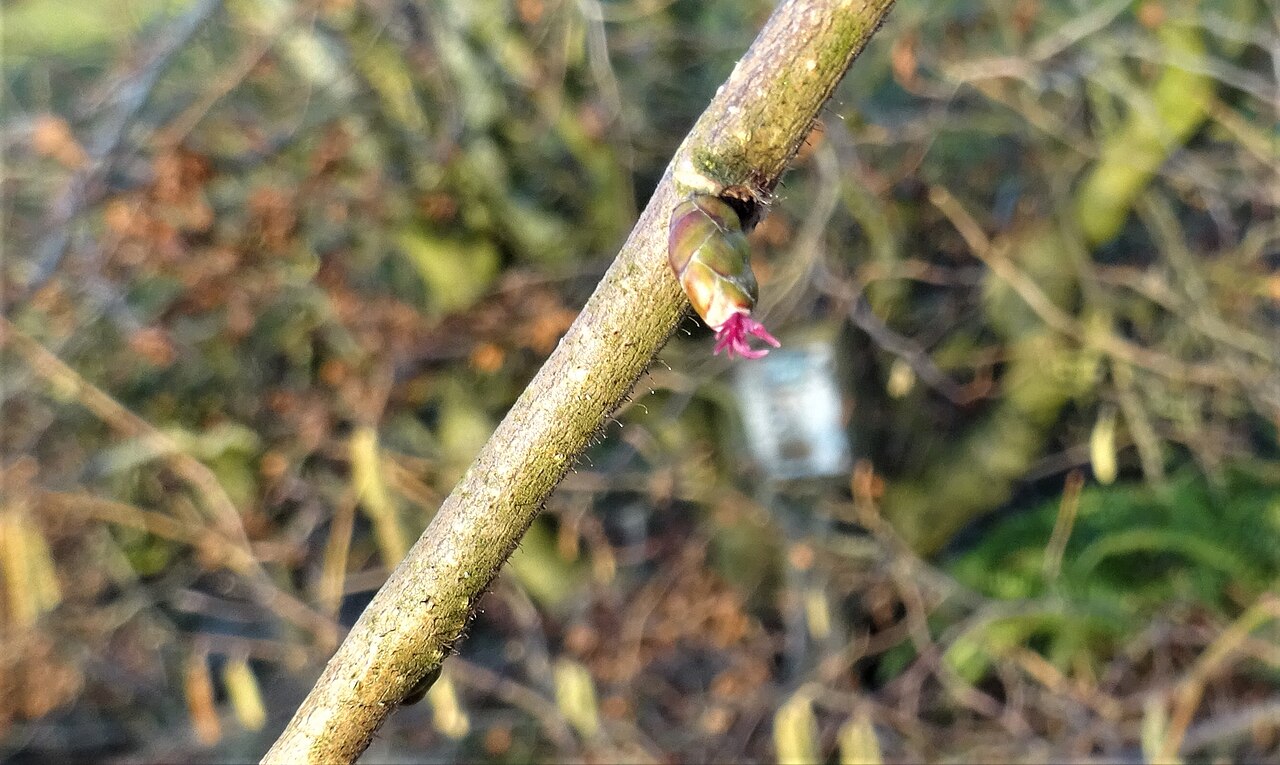
Lijeska ima jedno od najduljih razdoblja cvatnje među voćnim vrstama. Cvatnja počinje vrlo rano (od prosinca do veljače i ožujka), ali do oplodnje dolazi tek kad temperatura poraste, u prosjeku oko 9 °C, što može biti i do šest mjeseci nakon cvatnje (pelud miruje, a oplodnja se odgađa). Ta vremenska "razvučenost" znači da su cvjetovi tijekom zime dugo izloženi temperaturnim ekstremima.
Toplinska osjetljivost u doba klimatskih promjena
Vrijeme cvatnje lijeske jako ovisi o klimi i izrazito je osjetljivo na temperaturu, pa se znatno razlikuje iz godine u godinu. Istraživanja iz Slovenije pokazala su da porast temperature zraka od 1 °C ubrzava listanje za 2,5–3,9 dana, pri čemu je cvatnja još osjetljivija. To znači da tople zime sustavno pomiču cvatnju lijeske unaprijed.
Posljedice za proizvođača su dvojake i suprotstavljene:
- Blage zime mogu dovesti do nedovoljnog hlađenja. Ako se ne ispuni potreba za hladnoćom, može doći do nepotpunog razvoja pojedinih organa biljke (neujednačeno i otegnuto cvjetanje, slabija oplodnja, smanjena rodnost). Posebno su ugrožene sorte visokih potreba za hladnoćom posađene u pretoploj klimi.
- Topli zimski "valovi" mogu prerano potaknuti cvatnju i kretanje pupova. Kad je endodormancija već prekinuta, dovoljan je kratak topao period (model za južni Ontario navodi da endodormancija završava nakon razdoblja od 3–6 dana s dnevnim temperaturama ispod nule u studenom i prosincu te početkom akumulacije toplinskih jedinica) da pupovi krenu i izlože se naknadnom mrazu.
Pragovi izmrzavanja
Kad mirovanje popusti i tkiva postanu aktivnija, otpornost na niske temperature naglo opada. Okvirni pragovi izmrzavanja organa lijeske:
| Organ / faza | Temperatura oštećenja |
|---|---|
| Jednogodišnji izboji | oko −30 °C |
| Vegetativni pupovi | oko −25 °C |
| Neotvoreni muški i ženski cvatovi | −18 do −16 °C |
| Otvoreni muški i ženski cvjetovi | −7 do −10 °C |
| Pupovi lišća na početku vegetacije | −3 do −5 °C |
Vrijednosti su orijentacijske i ovise o sorti, kondiciji nasada i trajanju izloženosti hladnoći.
Jasno se vidi zašto je prerani prekid mirovanja opasan: dok mirujući pup podnosi i −25 °C, otvoreni cvijet strada već pri −7 do −10 °C, a tek potjerali lisni pup pri samo −3 do −5 °C. Svaki dan ranije cvatnje znači dulju izloženost mogućim kasnim mrazevima.
Praktične preporuke i česte pogreške
Preporuke
- Uskladite sortu s lokalnom klimom. U toplijim, blažim područjima birajte sorte poznate po nižoj potrebi za hladnoćom kako bi cvatnja bila ujednačena; u hladnijim područjima izbjegavajte ekstremno rano cvatuće sorte koje će redovito stradati od mraza.
- Pratite tijek zime, ne samo kalendar. Budući da je prekid mirovanja zbroj hladnoće i topline, "rano" i "kasno" mijenjaju se iz godine u godinu. Pratite lokalne meteo-podatke (sati u rasponu 0–7 °C, toplinske jedinice) i obavijesti savjetodavne službe.
- Planirajte zaštitu od mraza za rizične parcele (mrazišta, doline u koje se slijeva hladan zrak), osobito u godinama s ranim toplim valom nakon kojeg slijedi zahlađenje.
- Rezidbu obavljajte u skladu s mirovanjem. Zimska rezidba lješnjaka najbolje se izvodi pri temperaturama iznad 0 °C i, prema više izvora, nakon pojave prvih ženskih cvjetova, kako bi se izbjeglo oštećenje pupova i lakše procijenila rodnost.
Česte pogreške
- Pretpostavka da je "mirna" biljka sigurna. Vizualno mirovanje ne govori je li biljka u endodormanciji (otporna) ili ektodormanciji (spremna potjerati). Bez praćenja akumulacije hladnoće lako se podcijeni rizik.
- Brkanje mirovanja s problemom štetnika ili bolesti. Nabreknuli, deformirani ili neotvoreni pupovi često nisu posljedica dormancije, nego napada lijeskove grinje (Phytoptus avellanae) ili bakterijskog/gljivičnog oboljenja. Ako pupovi nabreknu, pocrvene i ne otvaraju se, posumnjajte na grinju, a ne na "poremećeno mirovanje". (Za suzbijanje vidjeti članke o zaštiti; sumporni pripravci djelotvorni su pri temperaturama iznad ~15 °C, uz obvezno poštivanje registracije i etikete.)
- Sadnja sorti visokih potreba za hladnoćom u pretoploj klimi, što vodi do otegnute, neujednačene cvatnje i slabe oplodnje.
Izvori
Ovaj je članak AI-sažetak sastavljen iz interne zbirke literature o lješnjaku (RAG korpus) te dopunjen javno dostupnim izvorima. Sadržaj je informativan i podložan provjeri. Glavni korišteni izvori:
- Mehlenbacher, S. A. (1991). Chilling requirements of hazelnut cultivars. Scientia Horticulturae, 47:271–282. — https://doi.org/10.1016/0304-4238(91)90010-V (raspon potreba za hladnoćom za rese, ženske cvjetove i lisne pupove; temperature 0–7 °C)
- Surveying the Hormonome of Hazelnut Catkins During Winter Dormancy (2025., bioRxiv preprint). — https://doi.org/10.1101/2025.10.25.684543 (tri faze mirovanja; uloga ABA, GA, auksina, citokinina i etilena)
- Lang, G. A. i sur. (1987.) — klasifikacija para-, endo- i ekodormancije (citirano u navedenim radovima)
- Diplomski rad (njem.), 2009. — definicija dormancije i podjela na para-/endo-/ekodormanciju te promjene hormona, šećera i sadržaja vode u pupovima (RAG korpus, izvor 11585953)
- Università degli Studi della Basilicata (2022.) — fiziologija mirovanja, akumulacija sati hladnoće (0–7 °C) i topline (>4 °C) (RAG korpus)
- "Hazelnut floral phenology in southern Ontario" (Canadian Journal of Plant Science, 2021.). — https://cdnsciencepub.com/doi/10.1139/CJPS-2020-0333 (potrebe rese vs. ženskih cvjetova; trajanje endodormancije)
- "Chilling requirements of hazelnut cultivars" — ScienceDirect. — https://www.sciencedirect.com/science/article/abs/pii/030442389190010V
- "The response of Corylus avellana L. phenology to rising temperature in north-eastern Slovenia". — https://www.researchgate.net/publication/51518294 (ubrzanje listanja 2,5–3,9 dana po °C)
- Završni rad, 2019. (RAG korpus, c4d48579) — pragovi izmrzavanja organa lijeske
- "Utjecaj niskih temperatura na izmrzavanje" (2021., RAG korpus, 9e960adf) — cvatnja i temperatura oplodnje (~9 °C)
- Obavijesti Ministarstva poljoprivrede / savjetodavne službe proizvođačima lijeske (2021., 2022., 2025., RAG korpus) — bubrenje pupova, fenofaze i razlikovanje od simptoma lijeskove grinje
- Rodriguez, A. i Sanchez-Tames, R. (1986.). Dormancy and seasonal changes of plant-growth regulators in hazel buds. Physiologia Plantarum, 66:288–292 (citirano u korpusu)